Jak powstają nasiona marihuany? Genetyka i dziedziczenie cech
Czym są nasiona marihuany i jaką rolę odgrywa w ich powstawaniu genetyka?
Nasiona marihuany, czyli konopi indyjskich (Cannabis sativa), są biologicznym rezultatem procesów rozmnażania płciowego roślin. Stanowią nośnik informacji genetycznej przekazywanej z pokolenia na pokolenie i zawierają zarodek, z którego może rozwinąć się nowa roślina. Ich powstawanie wiąże się z zapyleniem, zapłodnieniem oraz rozwojem struktur nasiennych. Na każdym z tych etapów istotną rolę odgrywają mechanizmy genetyczne, fizjologiczne i środowiskowe.
Choć nasiona poszczególnych odmian konopi mogą wyglądać podobnie, nie oznacza to, że zawierają identyczną informację genetyczną. Różnice pomiędzy nimi wynikają przede wszystkim z pochodzenia roślin rodzicielskich, sposobu dziedziczenia poszczególnych cech oraz zmienności genetycznej powstającej podczas rozmnażania. To właśnie te mechanizmy odpowiadają za różnorodność obserwowaną w obrębie jednego gatunku.
Genetyka konopi obejmuje wiele zagadnień, począwszy od podstawowej budowy DNA, przez dziedziczenie cech morfologicznych, aż po uwarunkowania płci roślin, skład chemiczny tkanek i różnice w cyklu życiowym. Zrozumienie tych zależności pozwala wyjaśnić, dlaczego potomstwo dwóch roślin nie musi być identyczne z żadnym z rodziców, nawet jeżeli pochodzą one z tej samej odmiany.
Istotne jest również rozróżnienie pomiędzy nazwą odmiany a rzeczywistą charakterystyką genetyczną rośliny. Nazwa handlowa może odnosić się do określonej linii hodowlanej, ale sama w sobie nie gwarantuje jednolitego zestawu genów u wszystkich osobników. Stabilność dziedziczonych cech zależy od historii danej populacji, stopnia jej zróżnicowania oraz sposobu, w jaki utrwalano określone właściwości w kolejnych pokoleniach.
Nasiono nie jest więc jedynie początkiem nowego organizmu. Stanowi również rezultat złożonego procesu biologicznego, w którym informacja genetyczna dwóch gamet zostaje połączona i przekazana do kolejnego pokolenia. Z perspektywy biologii jest to jeden z najważniejszych mechanizmów utrzymywania różnorodności w obrębie gatunku.
Budowa nasiona konopi i jego podstawowe funkcje
Nasiono konopi składa się z kilku podstawowych elementów, z których każdy pełni określoną funkcję. Najważniejsze z nich to zarodek, tkanki odżywcze oraz łupina nasienna. Ich rozwój rozpoczyna się po zapłodnieniu, a ostateczna budowa jest wynikiem skoordynowanych procesów komórkowych zachodzących w obrębie zalążka.
Zarodek jest strukturą, z której rozwija się nowa roślina. Zawiera komórki zdolne do dalszych podziałów i różnicowania, a także materiał genetyczny pochodzący od roślin rodzicielskich. W odpowiednich warunkach zarodek może rozpocząć kiełkowanie, podczas którego uruchamiane są procesy metaboliczne umożliwiające wzrost młodej rośliny.
Łupina nasienna pełni przede wszystkim funkcję ochronną. Ogranicza ryzyko uszkodzenia mechanicznego i pomaga chronić zarodek przed niekorzystnymi czynnikami zewnętrznymi. Jej właściwości fizyczne zależą od budowy tkanek, stopnia dojrzałości nasiona oraz procesów zachodzących podczas jego formowania.
W nasionach znajdują się również substancje zapasowe, które dostarczają energii i składników budulcowych na początkowych etapach rozwoju. Dzięki nim zarodek może rozpocząć wzrost, zanim młoda roślina uzyska zdolność do samodzielnego wytwarzania wystarczającej ilości związków organicznych w procesie fotosyntezy.
Warto podkreślić, że wygląd zewnętrzny nasiona nie pozwala w pełni ocenić jego genotypu. Dwa nasiona o podobnej wielkości i zbliżonym ubarwieniu mogą zawierać odmienne zestawy wariantów genetycznych. Z kolei różnice w wyglądzie nie zawsze oznaczają istotne różnice w potencjale biologicznym zarodka.
Od kwiatu do nasiona: podstawowe etapy procesu
Powstawanie nasion konopi rozpoczyna się od rozwoju struktur rozrodczych. W zależności od płci i biologii danego osobnika roślina wytwarza kwiaty zawierające organy odpowiedzialne za produkcję gamet męskich albo żeńskich. W przypadku typowych roślin dwupiennych kwiaty męskie i żeńskie występują na oddzielnych osobnikach, choć w obrębie gatunku spotyka się również inne układy płciowe.
W kwiatach męskich powstają ziarna pyłku, które przenoszą komórki biorące udział w zapłodnieniu. Kwiaty żeńskie zawierają zalążki, w których po odpowiednich procesach rozwojowych może powstać zarodek. Kiedy pyłek dotrze do właściwej struktury kwiatu żeńskiego, rozpoczyna się proces prowadzący do połączenia materiału genetycznego gamet.
Po zapłodnieniu komórka jajowa rozwija się w zarodek, a zalążek przekształca się w nasiono. W tym samym czasie zachodzą przemiany prowadzące do rozwoju tkanek ochronnych i gromadzenia substancji zapasowych. Proces ten wymaga współdziałania wielu mechanizmów biologicznych, ponieważ powstawanie dojrzałego nasiona nie ogranicza się do samego połączenia materiału genetycznego.
W trakcie rozwoju zarodka następują kolejne podziały komórkowe i procesy różnicowania. Komórki zaczynają pełnić określone funkcje, a podstawowy plan budowy przyszłej rośliny zostaje stopniowo utrwalony w strukturze zarodka. Jednocześnie rozwijają się mechanizmy umożliwiające przejście w stan spoczynku i przetrwanie okresu, w którym warunki środowiskowe nie sprzyjają kiełkowaniu.
Warto zauważyć, że dojrzałe nasiono nie jest genetyczną kopią rośliny macierzystej. W typowym rozmnażaniu płciowym jego zarodek otrzymuje materiał genetyczny od obojga rodziców. W rezultacie powstaje nowa kombinacja wariantów genetycznych, która może prowadzić do cech podobnych do rodzicielskich, ale również do właściwości odmiennych od obserwowanych u każdego z nich.
Zapylanie i zapłodnienie — dwa różne procesy
Zapylanie i zapłodnienie są ze sobą powiązane, jednak oznaczają dwa odrębne etapy rozmnażania roślin. Zapylanie polega na przeniesieniu pyłku do odpowiedniej części kwiatu żeńskiego. Zapłodnienie następuje później i obejmuje połączenie materiału genetycznego komórek rozrodczych.
U konopi pyłek jest przenoszony przede wszystkim przez wiatr. Po dotarciu do kwiatu żeńskiego może rozpocząć proces prowadzący do zapłodnienia. Nie każde zapylenie musi jednak zakończyć się powstaniem dojrzałego nasiona. Znaczenie mają między innymi żywotność pyłku, zdolność struktur rozrodczych do prawidłowego rozwoju oraz przebieg procesów fizjologicznych.
Podczas zapłodnienia dochodzi do połączenia haploidalnego materiału genetycznego gamet. Każda z nich zawiera pojedynczy zestaw chromosomów, a ich połączenie prowadzi do powstania zygoty, która posiada dwa zestawy chromosomów. Jeden zestaw pochodzi od rośliny dostarczającej komórkę jajową, a drugi od rośliny, z której pochodzi pyłek.
Powstała zygota rozpoczyna rozwój zarodkowy. W kolejnych etapach komórki dzielą się, a ich potomne komórki uzyskują różne funkcje. Jednocześnie aktywowane są mechanizmy kontrolujące prawidłowe kopiowanie DNA i rozdzielanie chromosomów. Błędy zachodzące w tych procesach mogą niekiedy wpływać na rozwój zarodka lub jego żywotność.
Rozróżnienie zapylania i zapłodnienia ma znaczenie również dla zrozumienia dziedziczenia. Samo przeniesienie pyłku nie przesądza jeszcze o ostatecznym genotypie potomstwa. Decydujące jest to, które gamety uczestniczą w zapłodnieniu i jakie warianty genetyczne zostają przekazane do zygoty.
DNA, geny i chromosomy w biologii konopi
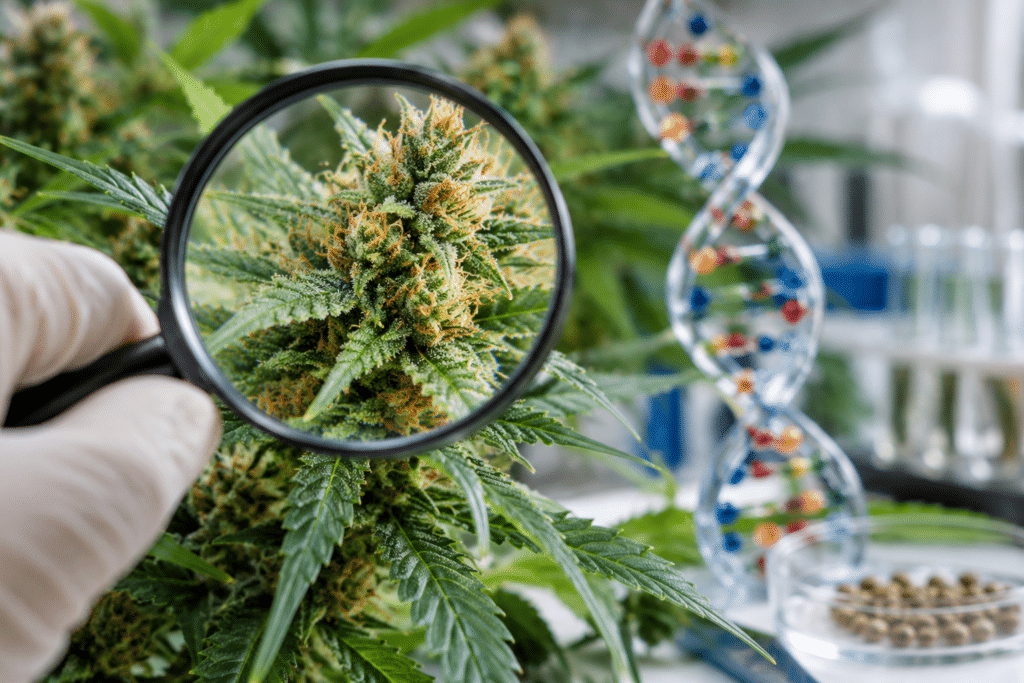
Podstawą dziedziczenia cech u konopi, podobnie jak u innych roślin, jest DNA, czyli kwas deoksyrybonukleinowy. To cząsteczka zawierająca informację niezbędną do rozwoju, funkcjonowania i rozmnażania organizmu. Informacja ta jest zapisana w kolejności nukleotydów, które tworzą charakterystyczną strukturę podwójnej helisy.
Gen jest odcinkiem DNA związanym z wytwarzaniem określonego produktu funkcjonalnego, na przykład białka albo cząsteczki RNA. Produkty te uczestniczą w licznych procesach biologicznych, takich jak budowa komórek, transport substancji, regulacja metabolizmu czy odbieranie sygnałów środowiskowych.
Nie wszystkie cechy organizmu zależą jednak od pojedynczego genu. Wiele właściwości, w tym rozmiar rośliny, termin kwitnienia, odporność na stres czy zawartość określonych związków chemicznych, może być uwarunkowanych działaniem wielu genów. Na ich ekspresję wpływają również warunki środowiskowe i wzajemne oddziaływania pomiędzy poszczególnymi elementami układu biologicznego.
DNA jest zorganizowane w chromosomy. W komórkach organizmu diploidalnego chromosomy występują zazwyczaj w parach homologicznych, przy czym jeden chromosom z każdej pary pochodzi od jednego rodzica, a drugi od drugiego. Chromosomy homologiczne zawierają odpowiadające sobie geny, ale mogą mieć odmienne warianty tych genów.
W przypadku konopi siewnych często podaje się liczbę 20 chromosomów w komórkach somatycznych typowych osobników diploidalnych. Oznacza to dziesięć par chromosomów. Gamety zawierają natomiast pojedynczy zestaw liczący dziesięć chromosomów. Podczas zapłodnienia dwa zestawy łączą się, przywracając diploidalną liczbę chromosomów.
Chromosomy płciowe stanowią szczególny element tego układu u wielu osobników konopi. W typowym systemie chromosomalnym samce mają układ XY, a samice XX. Biologia płci u konopi jest jednak bardziej złożona niż samo przyporządkowanie chromosomów, ponieważ na ekspresję cech płciowych mogą wpływać również czynniki genetyczne, hormonalne i środowiskowe.
Allele — dlaczego potomstwo nie dziedziczy zawsze identycznych cech?
Allele to różne warianty tego samego genu występujące w odpowiadających sobie miejscach chromosomów homologicznych. Mogą różnić się pojedynczymi nukleotydami, większymi fragmentami sekwencji DNA albo sposobem wpływania na aktywność określonych procesów biologicznych.
W przypadku organizmu diploidalnego dla wielu genów występują dwa allele, po jednym odziedziczonym od każdego rodzica. Jeśli oba warianty są takie same, osobnik jest homozygotą względem danego genu. Jeżeli się różnią, określa się go jako heterozygotę.
To rozróżnienie pomaga wyjaśnić, dlaczego potomstwo pochodzące od tych samych roślin rodzicielskich może wykazywać różnice. Rodzice przekazują gametom określone allele, ale nie wszystkie kombinacje muszą być identyczne u poszczególnych potomków. W rezultacie rośliny mogą różnić się między innymi tempem wzrostu, budową liści, terminem kwitnienia lub innymi właściwościami.
Homozygotyczność nie oznacza automatycznie, że organizm jest lepszy, silniejszy czy bardziej odporny. Informuje jedynie o tym, że w określonym miejscu genomu posiada dwa takie same allele. Z kolei heterozygotyczność nie musi prowadzić do niekorzystnych cech. Jej konsekwencje zależą od funkcji danego genu, charakteru wariantów i ich wzajemnych oddziaływań.
Warto również pamiętać, że pojedynczy gen może występować w populacji w wielu wariantach, mimo że konkretny osobnik diploidalny posiada zwykle tylko dwa allele danego locus. Różnorodność całej populacji jest zatem znacznie większa niż liczba wariantów obecnych w jednym organizmie.
Dominacja i recesywność — jak ujawniają się dziedziczone warianty?
Dominacja i recesywność opisują relację pomiędzy allelami, gdy ich połączenie wpływa na obserwowaną cechę. W uproszczonym modelu allel dominujący może warunkować określony fenotyp również wtedy, gdy występuje tylko w jednej kopii. Allel recesywny ujawnia się w takim modelu przede wszystkim wtedy, gdy obecne są dwie jego kopie.
Nie oznacza to jednak, że allel dominujący jest zawsze częstszy w populacji albo że zapewnia organizmowi przewagę. Dominacja opisuje sposób ujawniania się wariantów w określonym układzie genetycznym, a nie ich wartość biologiczną. Allel recesywny może być powszechny, a dominujący może występować stosunkowo rzadko.
W rzeczywistych organizmach relacje między allelami bywają bardziej skomplikowane. Przy dominacji niepełnej heterozygota może wykazywać cechę pośrednią pomiędzy dwiema homozygotami. Przy kodominacji oba warianty mogą wpływać na fenotyp w sposób możliwy do rozróżnienia.
Wiele cech konopi nie podlega prostym zasadom pojedynczego genu. W ich kształtowaniu uczestniczą liczne loci, a obserwowany efekt zależy od współdziałania wariantów genetycznych. Dlatego przypisywanie konkretnej właściwości jednej parze alleli bez odpowiednich danych może prowadzić do błędnych wniosków.
Przykładowo różnice w wysokości roślin, rozgałęzieniu czy terminie kwitnienia mogą wynikać z działania wielu genów, których efekty nakładają się na siebie. Dodatkowo te same warianty genetyczne mogą prowadzić do nieco innych rezultatów w odmiennych warunkach środowiskowych.
Mejoza i rekombinacja genetyczna
Jednym z najważniejszych procesów odpowiedzialnych za różnorodność potomstwa jest mejoza. To specjalny rodzaj podziału komórkowego, podczas którego liczba chromosomów zostaje zredukowana o połowę. W rezultacie powstają komórki haploidalne, które mogą uczestniczyć w rozmnażaniu płciowym.
Mejoza różni się od mitozy, czyli podziału odpowiedzialnego między innymi za wzrost i odnowę tkanek. W mitozie komórki potomne zachowują zasadniczo tę samą liczbę chromosomów co komórka macierzysta. W mejozie zachodzą dwa kolejne podziały po jednym etapie replikacji DNA, co prowadzi do powstania komórek o zredukowanej liczbie chromosomów.
Podczas mejozy chromosomy homologiczne mogą wymieniać odpowiadające sobie fragmenty DNA. Zjawisko to nazywa się crossing-over i stanowi jeden z podstawowych mechanizmów rekombinacji genetycznej. W jego wyniku powstają nowe kombinacje alleli, których nie było w identycznej postaci na chromosomach rodzicielskich.
Drugim ważnym mechanizmem jest niezależne rozchodzenie się par chromosomów do komórek potomnych. Oznacza to, że poszczególne gamety mogą otrzymywać różne kombinacje chromosomów pochodzących od dziadków danego osobnika. Liczba możliwych kombinacji jest duża, a rekombinacja dodatkowo ją zwiększa.
W praktyce oznacza to, że roślina przekazująca materiał genetyczny nie oddaje go w postaci niezmienionego zestawu odziedziczonego po swoich rodzicach. Jej gamety mogą zawierać nowe kombinacje wariantów genetycznych, a każde zapłodnienie tworzy kolejną kombinację materiału pochodzącego od dwojga rodziców.
To właśnie rekombinacja i niezależna segregacja chromosomów należą do głównych przyczyn różnorodności genetycznej w potomstwie. Ich znaczenie wykracza poza konopie, ponieważ podobne mechanizmy występują u wielu organizmów rozmnażających się płciowo.
Dlaczego nasiona z tej samej odmiany mogą dawać różne rośliny?
Nazwa odmiany nie oznacza, że wszystkie nasiona z nią związane mają identyczny genotyp. W zależności od historii hodowlanej, sposobu rozmnażania i poziomu homozygotyczności populacji potomstwo może wykazywać różny stopień zmienności.
Jeżeli rodzice posiadają wiele heterozygotycznych loci, ich potomstwo może otrzymywać różne kombinacje alleli. Nawet przy tych samych rodzicach poszczególne nasiona nie muszą więc zawierać identycznych zestawów genów. Jest to normalna konsekwencja rozmnażania płciowego, a nie automatyczny dowód na nieprawidłowość nasion.
Inaczej wygląda sytuacja w populacjach, w których przez wiele pokoleń utrwalano określone cechy i ograniczano zmienność genetyczną. W takich przypadkach potomstwo może być bardziej jednorodne, choć całkowita identyczność wszystkich osobników nadal nie jest gwarantowana.
Różnice mogą dotyczyć cech widocznych, takich jak kształt liści, wysokość, pokrój czy tempo rozwoju. Mogą również obejmować właściwości trudniejsze do zaobserwowania bez specjalistycznych analiz, na przykład skład chemiczny tkanek lub reakcję na stres środowiskowy.
Na obserwowany fenotyp wpływają również warunki otoczenia. Temperatura, dostępność wody, natężenie światła, skład podłoża i inne czynniki mogą zmieniać sposób, w jaki ujawniają się cechy uwarunkowane genetycznie. Dwie rośliny o zbliżonym genotypie nie zawsze będą więc wyglądały identycznie.
Istotną rolę odgrywa także interakcja genotypu ze środowiskiem. Niektóre warianty genetyczne mogą sprzyjać określonej reakcji na konkretne warunki, ale ich efekt będzie słabszy albo odmienny w innym otoczeniu. Właśnie dlatego sama nazwa handlowa nie wystarcza do przewidzenia wszystkich właściwości przyszłej rośliny.
Genotyp i fenotyp — dwa pojęcia, których nie należy mylić
Genotyp oznacza zestaw informacji genetycznej organizmu, natomiast fenotyp obejmuje obserwowalne i mierzalne właściwości powstające w wyniku działania genotypu oraz środowiska. Rozróżnienie tych pojęć ma podstawowe znaczenie dla interpretacji różnic pomiędzy roślinami.
Genotyp obejmuje zarówno warianty genów, jak i inne elementy genomu wpływające na funkcjonowanie organizmu. Fenotyp może natomiast obejmować cechy morfologiczne, fizjologiczne, biochemiczne i rozwojowe. Nie wszystkie właściwości można ocenić na podstawie wyglądu zewnętrznego.
Przykładowo dwie rośliny mogą mieć podobny pokrój, ale różnić się pod względem określonych wariantów genetycznych. Możliwa jest również sytuacja odwrotna: osobniki o zbliżonym genotypie mogą prezentować różnice fenotypowe, ponieważ rozwijały się w odmiennych warunkach.
Fenotyp nie jest więc prostym odzwierciedleniem DNA. To rezultat złożonego procesu, w którym informacja genetyczna wpływa na rozwój organizmu, a czynniki środowiskowe oddziałują na ekspresję genów, metabolizm i procesy fizjologiczne.
W naukach biologicznych zależność tę często opisuje się jako współdziałanie genotypu i środowiska. W przypadku konopi ma ona znaczenie przy interpretowaniu różnic pomiędzy osobnikami należącymi do tej samej populacji oraz przy ocenie stabilności cech w kolejnych pokoleniach.
Dziedziczenie cech wielogenowych
Wiele właściwości organizmów nie zależy od jednego genu, lecz od działania wielu loci. Takie cechy określa się jako wielogenowe lub poligeniczne. Ich zróżnicowanie często tworzy ciągły zakres wartości, a nie kilka wyraźnie odrębnych kategorii.
Do cech, których zmienność może być uwarunkowana wielogenowo, należą między innymi wysokość roślin, rozmiary poszczególnych organów, tempo wzrostu czy niektóre parametry składu chemicznego. Wpływ poszczególnych genów może być niewielki, ale ich łączny efekt bywa znaczący.
W przypadku cech wielogenowych nie wystarcza zazwyczaj prosta analiza dominacji i recesywności. Konieczne jest uwzględnienie wielu wariantów genetycznych, ich wzajemnych oddziaływań oraz wpływu środowiska. To sprawia, że przewidywanie fenotypu na podstawie ograniczonej informacji genetycznej może być niepewne.
Znaczenie ma również tak zwana odziedziczalność, która opisuje, jaka część zmienności danej cechy w określonej populacji i środowisku wiąże się ze zmiennością genetyczną. Nie jest ona stałą właściwością samego genu ani uniwersalną miarą dla całego gatunku. Może różnić się w zależności od badanej populacji i warunków, w których prowadzone są obserwacje.
Jeżeli określona cecha wykazuje wysoką odziedziczalność w jednej populacji, nie oznacza to automatycznie, że taki sam wynik uzyska się w innej populacji lub w odmiennym środowisku. Właściwa interpretacja wymaga znajomości metod badawczych, struktury populacji oraz sposobu pomiaru analizowanej właściwości.
Rola mutacji w powstawaniu różnorodności genetycznej
Mutacje to zmiany w materiale genetycznym. Mogą obejmować pojedyncze nukleotydy, większe fragmenty DNA, a także zmiany struktury lub liczby chromosomów. Stanowią jedno ze źródeł nowych wariantów genetycznych w populacjach.
Mutacje mogą powstawać spontanicznie podczas kopiowania DNA lub w wyniku działania określonych czynników zewnętrznych. Ich skutki są zróżnicowane. Część nie wpływa w zauważalny sposób na funkcjonowanie organizmu, inne mogą zmieniać określone cechy, a niektóre zaburzają podstawowe procesy komórkowe.
Nie należy utożsamiać mutacji z automatycznym powstaniem korzystnej właściwości. Zmiana w DNA nie musi przynosić żadnej przewagi, a jej konsekwencje zależą od miejsca wystąpienia, charakteru zmiany oraz warunków środowiskowych. Wiele mutacji pozostaje niewidocznych na poziomie fenotypu.
Mutacje obecne w komórkach uczestniczących w rozmnażaniu mogą zostać przekazane kolejnym pokoleniom. Zmiany występujące wyłącznie w określonych komórkach somatycznych nie muszą natomiast być dziedziczone przez potomstwo. Znaczenie ma więc nie tylko rodzaj mutacji, lecz także to, w jakiej komórce i na jakim etapie rozwoju powstała.
W dłuższej perspektywie nowe mutacje, rekombinacja i przepływ genów pomiędzy populacjami przyczyniają się do utrzymywania zmienności genetycznej. Na tę zmienność oddziałują również procesy ewolucyjne, w tym dobór naturalny i dryf genetyczny.
Dziedziczenie płci u konopi — znaczenie chromosomów i genów
Płeć biologiczna konopi jest jednym z najważniejszych zagadnień związanych z genetyką tego gatunku. Wpływa na budowę kwiatów, sposób rozmnażania oraz przebieg procesów prowadzących do powstania nasion. Zrozumienie mechanizmów determinacji płci pozwala również wyjaśnić, dlaczego potomstwo może wykazywać różnice w rozwoju struktur rozrodczych, nawet jeśli poszczególne rośliny pochodzą z tej samej populacji.
Konopie są najczęściej kojarzone z dwupiennością, czyli występowaniem kwiatów męskich i żeńskich na oddzielnych osobnikach. W takim układzie rośliny męskie wytwarzają pyłek, natomiast rośliny żeńskie rozwijają zalążki, z których po zapłodnieniu mogą powstać nasiona. Nie jest to jednak jedyny możliwy sposób występowania struktur rozrodczych w obrębie gatunku.
U konopi obserwuje się również osobniki, na których mogą występować kwiaty obu płci. Zjawisko to należy rozpatrywać w kontekście biologii rozwoju, regulacji hormonalnej, genotypu oraz wpływu czynników środowiskowych. Samo pojawienie się określonego rodzaju kwiatów nie zawsze pozwala jednoznacznie określić wszystkie mechanizmy genetyczne odpowiedzialne za rozwój danego osobnika.
W typowym systemie chromosomalnym płeć konopi wiąże się z obecnością chromosomów płciowych. Samice mają zazwyczaj dwa chromosomy X, natomiast samce posiadają chromosom X i Y. Chromosomy te różnią się zawartością informacji genetycznej, a ich obecność uczestniczy w regulacji rozwoju cech płciowych.
Nie należy jednak traktować chromosomów płciowych jako jedynego czynnika wpływającego na wszystkie aspekty rozwoju rośliny. Ekspresja cech płciowych jest rezultatem działania sieci genów, sygnałów hormonalnych i mechanizmów rozwojowych. W określonych warunkach mogą występować również odchylenia od typowego wzorca rozwoju.
Znaczenie ma ponadto rozróżnienie pomiędzy płcią chromosomalną, rozwojem struktur rozrodczych i rzeczywistym udziałem rośliny w procesie rozmnażania. Są to powiązane ze sobą, ale nie całkowicie tożsame zagadnienia biologiczne. Ich rozdzielenie pomaga uniknąć nadmiernych uproszczeń w opisie genetyki konopi.
Chromosomy X i Y a dziedziczenie cech płciowych
Chromosomy płciowe są elementem genomu, który uczestniczy w określaniu rozwoju cech związanych z płcią. W systemie XX/XY samice mają zwykle dwa chromosomy X, a samce jeden chromosom X i jeden Y. Taki układ stanowi podstawowy model wyjaśniający dziedziczenie chromosomalnych uwarunkowań płci u konopi.
Podczas tworzenia gamet dochodzi do podziału mejotycznego. W typowym układzie samica przekazuje gametom chromosom X, natomiast samiec może przekazywać chromosom X albo Y. Po połączeniu gamet powstaje zygota, której zestaw chromosomów obejmuje materiał genetyczny obojga rodziców.
W uproszczonym modelu chromosomalnym połączenie gamet zawierających chromosomy X prowadzi do powstania układu XX, natomiast połączenie gamety zawierającej X z gametą zawierającą Y prowadzi do układu XY. Model ten wyjaśnia podstawowy mechanizm dziedziczenia chromosomów płciowych, ale nie opisuje wszystkich możliwych różnic w rozwoju cech płciowych.
W rzeczywistych populacjach biologicznych mogą występować dodatkowe zależności wynikające ze zmienności genetycznej, regulacji ekspresji genów i czynników środowiskowych. Dlatego prawidłowe określenie płci na podstawie pojedynczej obserwacji morfologicznej może być mniej pewne niż analiza uwzględniająca szerszy kontekst biologiczny.
Chromosomy płciowe zawierają również geny, które nie ograniczają się wyłącznie do rozwoju struktur rozrodczych. Podobnie jak inne chromosomy mogą uczestniczyć w procesach wpływających na funkcjonowanie organizmu. Z tego powodu znaczenie chromosomów X i Y nie sprowadza się jedynie do określania płci.
Warto podkreślić, że sam fakt posiadania określonego zestawu chromosomów nie pozwala przewidzieć wszystkich cech fenotypowych przyszłej rośliny. Na wiele właściwości wpływa jednocześnie duża liczba genów, a także warunki, w których przebiega rozwój osobnika.
Jak geny wpływają na rozwój kwiatów konopi?
Rozwój kwiatów jest procesem regulowanym przez liczne geny, które kontrolują powstawanie tkanek, różnicowanie komórek i kształtowanie poszczególnych struktur. W odpowiednim momencie rozwoju roślina przechodzi od wytwarzania struktur wegetatywnych do tworzenia struktur rozrodczych. Przebieg tego procesu zależy od współdziałania czynników genetycznych i sygnałów fizjologicznych.
Geny uczestniczące w rozwoju kwiatów wpływają między innymi na tożsamość organów, organizację tkanek i powstawanie struktur odpowiedzialnych za rozmnażanie. Nie działają jednak w izolacji. Ich aktywność jest częścią rozbudowanej sieci regulacyjnej, w której znaczenie mają również hormony roślinne oraz sygnały pochodzące ze środowiska.
W przypadku konopi rozwój kwiatów męskich i żeńskich wiąże się z odmiennym różnicowaniem struktur rozrodczych. Kwiaty męskie tworzą organy produkujące pyłek, natomiast kwiaty żeńskie zawierają struktury związane z przyjmowaniem pyłku i rozwojem zalążków. Różnice te wynikają z procesów rozwojowych kontrolowanych przez geny i mechanizmy regulacyjne.
Ekspresja genów oznacza wykorzystywanie informacji zapisanej w DNA do wytwarzania funkcjonalnych produktów, takich jak białka i cząsteczki RNA. Nie wszystkie geny są aktywne w każdej komórce i w każdym momencie życia rośliny. Wiele z nich ulega aktywacji tylko w określonych tkankach albo na konkretnych etapach rozwoju.
Ta selektywna aktywność genów umożliwia różnicowanie komórek. Chociaż większość komórek organizmu zawiera zasadniczo ten sam genom, mogą one pełnić bardzo odmienne funkcje. Komórki tworzące tkanki liścia różnią się pod względem aktywności genów od komórek uczestniczących w rozwoju kwiatów czy korzeni.
Niektóre różnice w rozwoju kwiatów mogą wynikać z odziedziczonych wariantów genetycznych, a inne z regulacji ekspresji genów. Oznacza to, że analizując rozwój struktur rozrodczych, należy uwzględniać zarówno sekwencję DNA, jak i mechanizmy decydujące o tym, kiedy i w jakich tkankach określone geny są aktywne.
Hormony roślinne i ich znaczenie w rozwoju konopi
Hormony roślinne to związki chemiczne, które regulują wzrost, rozwój i reakcje roślin na warunki środowiskowe. Występują w niewielkich stężeniach, ale mogą wywoływać istotne zmiany w aktywności komórek i tkanek. Ich działanie jest ściśle powiązane z genetycznymi mechanizmami regulacji rozwoju.
Do najważniejszych grup hormonów roślinnych należą auksyny, gibereliny, cytokininy, kwas abscysynowy i etylen. Poszczególne grupy uczestniczą w różnych procesach, takich jak podziały komórkowe, wydłużanie pędów, dojrzewanie tkanek, reakcje na stres czy regulacja rozwoju organów.
Nie istnieje jednak prosty układ, w którym jeden hormon odpowiada za pojedynczą cechę, a pozostałe nie mają na nią wpływu. Skutki działania hormonów zależą od ich stężenia, miejsca występowania, etapu rozwoju rośliny oraz wzajemnych oddziaływań pomiędzy szlakami sygnałowymi.
W kontekście rozwoju płciowego znaczenie mają mechanizmy hormonalne współdziałające z genetycznym systemem determinacji płci. W określonych okolicznościach mogą one wpływać na ekspresję cech rozrodczych, jednak szczegółowe zależności są złożone i nie powinny być sprowadzane do jednego uniwersalnego mechanizmu.
Hormony uczestniczą również w regulacji innych procesów, które pośrednio wpływają na powstawanie nasion. Obejmują one rozwój tkanek kwiatowych, funkcjonowanie komórek, transport substancji i reakcje fizjologiczne związane z dojrzewaniem. Prawidłowy rozwój nasiona wymaga skoordynowanej aktywności wielu układów regulacyjnych.
Ważne jest zatem rozróżnienie między bezpośrednim uwarunkowaniem genetycznym a regulacją sposobu, w jaki genetyczne predyspozycje ujawniają się w organizmie. Genotyp stanowi podstawę rozwoju, ale jego efekty są realizowane przez procesy komórkowe, hormonalne i fizjologiczne.
Czym są nasiona regularne i jakie mają podstawy genetyczne?
Nasiona regularne to określenie stosowane w branży konopnej w odniesieniu do nasion powstałych w wyniku typowego rozmnażania płciowego, które nie zostały specjalnie wyselekcjonowane pod kątem uzyskania wyłącznie roślin żeńskich. W ich przypadku potomstwo może obejmować osobniki męskie i żeńskie, a dokładny rozkład zależy od biologii rodziców oraz uwarunkowań danej populacji.
Termin „regularne” nie oznacza odrębnego rodzaju nasiona w sensie botanicznym. Wszystkie prawidłowo rozwinięte nasiona konopi powstają w ramach określonych procesów biologicznych, a nazwy stosowane w handlu opisują przede wszystkim ich pochodzenie, przewidywane właściwości lub sposób uzyskania.
Genetyczna charakterystyka nasion regularnych zależy od materiału rodzicielskiego. Jeżeli rodzice różnią się wieloma wariantami genetycznymi, potomstwo może wykazywać znaczną zmienność. Jeśli natomiast pochodzą z bardziej jednorodnej populacji, różnice pomiędzy potomkami mogą być mniejsze.
Nie należy zakładać, że wszystkie nasiona regularne pochodzące od jednej odmiany będą identyczne pod względem genotypu. Rozmnażanie płciowe prowadzi do rekombinacji, a ta tworzy nowe kombinacje alleli. Stopień podobieństwa potomstwa zależy więc od stopnia genetycznej jednorodności populacji rodzicielskiej.
Różnice mogą dotyczyć zarówno płci, jak i wielu innych cech biologicznych. W obrębie jednej populacji mogą występować różnice w budowie roślin, tempie rozwoju, terminie kwitnienia i reakcjach na środowisko. Są one naturalnym następstwem zmienności genetycznej.
Warto również odróżnić nasiona regularne od nasion o ustalonej charakterystyce hodowlanej. Pierwsze określenie opisuje przede wszystkim kategorię handlową, natomiast stabilność cech jest odrębnym zagadnieniem genetycznym. Populacja może być stosunkowo jednorodna lub bardzo zróżnicowana niezależnie od samego określenia stosowanego w sprzedaży.
Nasiona feminizowane — znaczenie dziedziczenia i stabilności genetycznej
Nasiona feminizowane to kategoria nasion konopi opracowana w celu uzyskania potomstwa z przewagą roślin żeńskich. Ich charakterystyka wiąże się ze sposobem powstania materiału rodzicielskiego oraz mechanizmami biologicznymi wykorzystywanymi w procesie hodowlanym. Nie oznacza to jednak, że każdy osobnik uzyskany z takiego nasiona musi wykazywać identyczny fenotyp.
W typowym systemie chromosomalnym samice konopi posiadają układ XX. Z tego powodu materiał genetyczny pochodzący od dwóch roślin o żeńskim układzie chromosomalnym nie zawiera chromosomu Y w standardowym modelu dziedziczenia. Należy jednak pamiętać, że sama obecność chromosomów XX nie wyjaśnia wszystkich aspektów rozwoju cech płciowych.
Feminizacja w kontekście hodowlanym odnosi się do uzyskiwania nasion o określonym przewidywanym rozkładzie płci potomstwa. Nie należy jej mylić z całkowitą stabilizacją genetyczną odmiany. Nasiona mogą wykazywać przewidywaną charakterystykę płciową, a jednocześnie różnić się wieloma innymi cechami.
Jeżeli rośliny rodzicielskie są genetycznie zróżnicowane, ich potomstwo może dziedziczyć różne kombinacje alleli. Dotyczy to również nasion feminizowanych. Sama kategoria handlowa nie gwarantuje identycznego genotypu wszystkich zarodków ani jednakowego poziomu jednorodności cech morfologicznych.
Istotne jest także rozróżnienie pomiędzy płcią genetyczną a ekspresją cech płciowych. U roślin konopi mogą występować zjawiska związane z niestandardowym rozwojem struktur rozrodczych. Ich przyczyny mogą obejmować zarówno uwarunkowania genetyczne, jak i oddziaływanie środowiska. Nie można więc sprowadzać całego zagadnienia do jednego chromosomu lub pojedynczego genu.
Ocena stabilności materiału genetycznego wymaga szerszego spojrzenia na historię hodowlaną populacji, jej zmienność i sposób dziedziczenia cech. Jednolity rozkład płci potomstwa oraz jednorodność pozostałych właściwości to dwa różne zagadnienia, które należy analizować oddzielnie.
Nasiona automatyczne i genetyczne uwarunkowania cyklu życiowego
Nasiona automatyczne, określane również jako autoflowering, wiążą się z dziedziczeniem cechy dotyczącej sposobu regulacji kwitnienia. W przeciwieństwie do typowych odmian fotoperiodycznych, u których przejście do kwitnienia jest silnie związane z długością dnia i nocy, rośliny automatyczne wykazują odmienny wzorzec rozwoju.
Podstawą tej różnicy są uwarunkowania genetyczne wpływające na reakcję rośliny na sygnały środowiskowe. W przypadku odmian automatycznych przejście do kwitnienia jest w większym stopniu związane z wiekiem i etapem rozwoju osobnika, a w mniejszym stopniu zależy od klasycznej reakcji fotoperiodycznej.
W historii hodowli konopi znaczenie miały populacje związane z Cannabis ruderalis, których cechy dotyczące cyklu życiowego stały się przedmiotem zainteresowania hodowców. Współczesne odmiany automatyczne mogą mieć jednak złożone pochodzenie genetyczne i nie powinny być utożsamiane z jedną, jednolitą populacją o niezmiennych właściwościach.
Dziedziczenie cechy automatycznego kwitnienia jest zagadnieniem genetycznym, które może zależeć od określonych wariantów genów i ich wzajemnych oddziaływań. W uproszczonych modelach hodowlanych cechę tę opisuje się niekiedy jako w dużym stopniu recesywną, jednak rzeczywista charakterystyka zależy od materiału genetycznego i podstaw przyjętego modelu.
Nie każda odmiana automatyczna musi charakteryzować się takim samym tempem rozwoju, rozmiarami czy budową. Poszczególne linie mogą różnić się wieloma właściwościami, ponieważ oprócz genów związanych z kwitnieniem dziedziczą również warianty odpowiadające za inne cechy biologiczne.
Warto podkreślić, że określenie „automatyczne” odnosi się przede wszystkim do charakterystyki cyklu kwitnienia. Nie jest ono synonimem identyczności genetycznej, gwarancji określonego rozmiaru ani pełnej przewidywalności wszystkich właściwości potomstwa.
Porównanie nasion regularnych, feminizowanych i automatycznych
Określenia regularne, feminizowane i automatyczne opisują różne aspekty nasion konopi. Pierwsze odnosi się do kategorii związanej z rozkładem płci potomstwa, drugie do uzyskiwania potomstwa z przewagą roślin żeńskich, a trzecie do genetycznych uwarunkowań cyklu kwitnienia. Kategorie te nie stanowią trzech całkowicie rozłącznych grup biologicznych.
| Cecha | Nasiona regularne | Nasiona feminizowane | Nasiona automatyczne |
|---|---|---|---|
| Główne znaczenie nazwy | Kategoria związana z typowym rozkładem płci potomstwa | Kategoria ukierunkowana na uzyskanie potomstwa żeńskiego | Kategoria związana z automatycznym cyklem kwitnienia |
| Podstawa biologiczna | Typowe rozmnażanie płciowe | Sposób uzyskania materiału rodzicielskiego i dziedziczenie płci | Dziedziczone uwarunkowania reakcji kwitnienia |
| Zmienność genetyczna | Zależy od rodziców i stopnia jednorodności populacji | Może występować mimo przewidywanego rozkładu płci | Zależy od pochodzenia genetycznego i historii hodowlanej |
| Czy nazwa gwarantuje identyczność roślin? | Nie | Nie | Nie |
| Czy kategorie mogą się łączyć? | Może występować odrębnie od kategorii feminizowanej | Może dotyczyć odmian fotoperiodycznych i automatycznych | Może jednocześnie występować z cechą feminizacji |
Zestawienie pokazuje, że nazwy handlowe nie zawsze opisują ten sam poziom biologicznej organizacji. Jedna kategoria dotyczy przede wszystkim przewidywanego rozkładu płci, inna sposobu uzyskania potomstwa, a jeszcze inna określonej cechy rozwojowej. W konsekwencji nasiona mogą należeć jednocześnie do więcej niż jednej kategorii.
Żadna z tych nazw nie stanowi samodzielnej informacji o całym genotypie nasiona. Do oceny rzeczywistej charakterystyki genetycznej potrzebne byłyby dane dotyczące pochodzenia populacji, odziedziczonych wariantów oraz stabilności poszczególnych cech.
Hybrydy konopi i znaczenie krzyżowania genetycznego
Hybrydy powstają w wyniku połączenia materiału genetycznego pochodzącego od odmiennych linii lub populacji rodzicielskich. W hodowli roślin krzyżowanie może służyć łączeniu wybranych cech, zwiększaniu zmienności genetycznej albo badaniu sposobu dziedziczenia określonych właściwości.
W przypadku konopi określenie hybryda często odnosi się do potomstwa powstałego z połączenia różnych linii genetycznych. Linie te mogą różnić się pochodzeniem, budową roślin, cyklem rozwojowym lub innymi cechami. Sam fakt pochodzenia od dwóch różnych linii nie przesądza jednak o tym, że potomstwo będzie wykazywało wszystkie pożądane właściwości obu rodziców.
Podczas krzyżowania allele pochodzące od obojga rodziców łączą się w nowych kombinacjach. W pierwszym pokoleniu potomnym może to prowadzić do zwiększonej jednorodności niektórych cech, ale również do występowania różnic w obrębie populacji. Wynik zależy od genotypów rodzicielskich oraz sposobu dziedziczenia analizowanych właściwości.
W genetyce roślin istotnym zjawiskiem jest heterozja, nazywana również wigorem mieszańców. Polega ona na tym, że niektóre cechy potomstwa mieszańcowego mogą osiągać wartości większe niż u rodziców. Zjawisko to obserwuje się w różnych gatunkach roślin, ale jego występowanie i siła zależą od konkretnego układu genetycznego.
Heterozja nie oznacza, że każdy mieszaniec będzie lepszy od obojga rodziców pod każdym względem. Może dotyczyć wybranych właściwości, podczas gdy inne cechy pozostają podobne albo wykazują większą zmienność. Nie stanowi również gwarancji, że uzyskane potomstwo zachowa takie same właściwości w kolejnych pokoleniach.
W przypadku rozmnażania kolejnych pokoleń mieszańców dochodzi do dalszej segregacji alleli i rekombinacji. W rezultacie potomstwo może wykazywać większą różnorodność niż pierwsze pokolenie. Jest to jeden z powodów, dla których określenie hybryda nie powinno być utożsamiane z trwałą jednorodnością genetyczną.
Pokolenia F1, F2 i kolejne etapy dziedziczenia
W genetyce określenia F1 i F2 służą do opisywania kolejnych pokoleń potomstwa w badaniach krzyżówkowych. F1 to pierwsze pokolenie potomne uzyskane z określonego krzyżowania rodzicielskiego, natomiast F2 jest zazwyczaj pokoleniem powstałym w wyniku rozmnażania osobników F1 w odpowiednim układzie badawczym.
W pierwszym pokoleniu potomnym część cech może wykazywać stosunkowo dużą jednorodność, szczególnie jeżeli linie rodzicielskie były genetycznie ustalone względem analizowanych loci. Nie oznacza to jednak, że wszystkie osobniki F1 są identyczne pod względem całego genomu ani że każda krzyżówka daje jednolity rezultat.
W pokoleniu F2 następuje segregacja alleli pochodzących od rodziców F1. Jeśli osobniki F1 są heterozygotyczne w określonych miejscach genomu, ich potomstwo może wykazywać różne kombinacje genotypów. W konsekwencji obserwuje się niekiedy większą różnorodność fenotypową niż w pierwszym pokoleniu.
Klasyczny przykład stanowi pojedynczy gen, dla którego oba osobniki rodzicielskie są heterozygotami. W takim uproszczonym modelu potomstwo może obejmować trzy podstawowe układy genotypów: homozygotę z jednym wariantem, heterozygotę i homozygotę z drugim wariantem. Ich proporcje teoretyczne wynikają z zasad segregacji alleli.
Rzeczywiste cechy konopi często są jednak bardziej złożone. W przypadku właściwości wielogenowych liczba możliwych kombinacji genetycznych szybko rośnie, a wpływ środowiska utrudnia bezpośrednie przewidywanie fenotypu. Dlatego proste proporcje mendelowskie można stosować tylko wtedy, gdy badana cecha rzeczywiście odpowiada założeniom danego modelu.
W kolejnych pokoleniach zmienność genetyczna może się utrzymywać, zmniejszać lub zmieniać swoją strukturę, zależnie od sposobu rozmnażania i historii populacji. Nie ma jednej uniwersalnej reguły określającej, jak szybko wszystkie cechy zostaną ustalone. Każdy przypadek wymaga uwzględnienia liczby genów, ich dziedziczenia oraz stopnia wyjściowej zmienności.
Homozygotyczność, heterozygotyczność i stabilność odmiany
Homozygotyczność oznacza posiadanie dwóch takich samych alleli w określonym miejscu genomu. Heterozygotyczność występuje wtedy, gdy dwa allele różnią się od siebie. Oba pojęcia mają istotne znaczenie dla zrozumienia, jak zachowują się cechy w kolejnych pokoleniach i dlaczego potomstwo nie zawsze przypomina rodziców w identycznym stopniu.
Jeżeli populacja jest homozygotyczna względem określonego genu, przekazywanie alleli związanych z tym locus może być bardziej przewidywalne. Nie oznacza to jednak pełnej stabilności całej odmiany. Roślina może być homozygotyczna w jednym miejscu genomu, a jednocześnie heterozygotyczna w wielu innych.
Stabilność genetyczna odnosi się do zdolności populacji do zachowywania określonych cech w kolejnych pokoleniach. Jest pojęciem szerszym niż homozygotyczność, ponieważ uwzględnia wiele loci, ich wzajemne oddziaływania oraz zmienność obserwowaną w całej populacji.
W praktyce naukowej jednorodność populacji ocenia się na podstawie danych dotyczących genotypów i fenotypów. W zależności od celu badania analizuje się między innymi różnorodność alleli, podobieństwo genetyczne osobników, rozkład określonych cech oraz ich powtarzalność w różnych warunkach.
Nie można zatem wiarygodnie stwierdzić, że dana linia jest całkowicie stabilna wyłącznie na podstawie deklaracji handlowej. Rzetelna ocena wymaga informacji o historii hodowlanej, zakresie badanych cech i metodach wykorzystanych do ich analizy.
Stabilność nie oznacza również braku wszelkiej zmienności biologicznej. Nawet w stosunkowo jednorodnych populacjach mogą pojawiać się różnice wynikające z warunków środowiskowych, nowych mutacji albo innych procesów biologicznych. Istotne jest to, czy obserwowana zmienność mieści się w zakresie oczekiwanym dla danej populacji.
Dlaczego dziedziczenie nie zawsze przebiega zgodnie z prostymi schematami?
Klasyczne prawa Mendla stanowią podstawę rozumienia dziedziczenia, ale nie opisują wszystkich możliwych zależności genetycznych. Ich najprostsze zastosowanie dotyczy cech kontrolowanych przez pojedynczy gen, przy określonych założeniach dotyczących dominacji, segregacji alleli i sposobu rozmnażania.
W wielu przypadkach cechy są warunkowane przez wiele genów, które mogą działać addytywnie albo oddziaływać ze sobą w bardziej złożony sposób. Zjawisko, w którym efekt jednego genu zależy od wariantów innych genów, nazywa się epistazą. Może ono prowadzić do sytuacji, w których obserwowane proporcje fenotypów odbiegają od klasycznych modeli.
Istotne są również geny sprzężone, czyli znajdujące się blisko siebie na tym samym chromosomie. Warianty takich genów mogą być dziedziczone razem częściej, niż wynikałoby to z założenia ich niezależnej segregacji. Crossing-over może jednak prowadzić do rozdzielenia alleli znajdujących się na tym samym chromosomie.
Na dziedziczenie wpływa także zmienność strukturalna genomu, mutacje i różnice w regulacji ekspresji genów. Dodatkowym elementem jest wpływ środowiska, który może zmieniać sposób ujawniania się określonych cech bez konieczności zmiany samej sekwencji DNA.
W niektórych sytuacjach znaczenie mogą mieć również zjawiska epigenetyczne, czyli zmiany w regulacji aktywności genów, które nie polegają na zmianie sekwencji nukleotydów. Przykładem są określone modyfikacje DNA i białek związanych z jego organizacją, wpływające na dostępność informacji genetycznej dla mechanizmów komórkowych.
Nie wszystkie zmiany epigenetyczne są trwałe ani dziedziczone przez kolejne pokolenia. Ich stabilność zależy od rodzaju mechanizmu, tkanki i warunków biologicznych. Dlatego nie należy traktować epigenetyki jako uniwersalnego wyjaśnienia każdej różnicy pomiędzy roślinami.
Wpływ środowiska na ekspresję cech dziedzicznych
Genotyp określa biologiczne możliwości organizmu, ale nie wyznacza w pełni każdego aspektu jego rozwoju niezależnie od otoczenia. Wzrost i funkcjonowanie roślin zależą od interakcji pomiędzy odziedziczoną informacją genetyczną a warunkami środowiskowymi.
Temperatura, dostępność wody, natężenie światła, skład mineralny podłoża i inne czynniki mogą wpływać na tempo procesów fizjologicznych. W rezultacie rośliny o podobnym genotypie mogą różnić się pod względem rozmiarów, budowy tkanek lub innych cech fenotypowych.
Nie oznacza to, że środowisko dowolnie zmienia genetyczną tożsamość rośliny. W wielu przypadkach wpływa przede wszystkim na ekspresję genów, aktywność enzymów, gospodarkę wodną i przebieg procesów metabolicznych. Zmiany te mogą prowadzić do odmiennych rezultatów rozwojowych mimo braku zmian w sekwencji DNA.
Istotne jest również zjawisko plastyczności fenotypowej. Oznacza ono zdolność jednego genotypu do wytwarzania różnych fenotypów w zależności od warunków środowiskowych. Zakres tej plastyczności jest uwarunkowany biologicznie i może różnić się pomiędzy genotypami.
Interakcja genotypu ze środowiskiem oznacza natomiast, że różne genotypy nie muszą reagować w taki sam sposób na zmianę warunków. Jedna roślina może wykazywać niewielkie zmiany określonej cechy, podczas gdy inna, o odmiennym genotypie, może reagować znacznie silniej.
Z tego względu porównywanie cech roślin pochodzących z różnych źródeł wymaga uwzględnienia warunków, w których były obserwowane. Bez takiego kontekstu łatwo przypisać różnicom środowiskowym znaczenie genetyczne albo błędnie uznać, że dwie podobne rośliny muszą mieć identyczny materiał genetyczny.
Znaczenie pochodzenia genetycznego w ocenie nasion
Pochodzenie genetyczne nasion obejmuje informacje o populacji, linii hodowlanej i roślinach, od których pochodzi materiał rozrodczy. Dane te pomagają interpretować przewidywane właściwości potomstwa, ale ich wartość zależy od dokładności dokumentacji oraz jakości przeprowadzonych badań.
Sama nazwa odmiany nie dostarcza pełnej informacji o genotypie. Nazwy handlowe mogą być używane w różny sposób, a podobne nazwy nie muszą oznaczać identycznego pochodzenia genetycznego. Zdarza się również, że materiał oferowany pod tą samą nazwą różni się w zależności od producenta lub historii danej linii.
Wiarygodna dokumentacja pochodzenia może zawierać informacje o rodzicach, historii krzyżowania, charakterystyce populacji i wynikach oceny wybranych cech. W badaniach naukowych dodatkowe znaczenie mają dane molekularne, które umożliwiają porównywanie określonych fragmentów genomu.
Analizy molekularne mogą pomagać w określaniu podobieństwa genetycznego, identyfikowaniu wariantów DNA i ocenie struktury populacji. Ich zakres zależy od zastosowanej metody. Badanie wybranych markerów nie musi obejmować całego genomu, dlatego nie powinno być interpretowane jako pełny opis wszystkich cech rośliny.
Równie ważne jest rozróżnienie pomiędzy autentycznością pochodzenia a przewidywalnością fenotypu. Potwierdzenie, że materiał należy do określonej linii genetycznej, nie oznacza automatycznie, że każdy osobnik będzie identyczny pod względem wszystkich właściwości. Wpływają na to między innymi segregacja alleli i zmienność wewnątrz populacji.
W ocenie nasion najważniejsze jest zatem unikanie uproszczonych założeń. Informacja o pochodzeniu może być wartościowa, ale powinna być interpretowana w kontekście rzeczywistych danych biologicznych, a nie wyłącznie nazwy lub opisu handlowego.
Genetyka a zdolność kiełkowania nasion
Zdolność kiełkowania oznacza możliwość rozpoczęcia rozwoju przez zarodek w odpowiednich warunkach. Zależy ona od wielu czynników, w tym od dojrzałości nasiona, jego stanu fizjologicznego, jakości materiału genetycznego oraz warunków przechowywania.
Geny uczestniczą w regulacji procesów związanych z rozwojem zarodka, metabolizmem i reakcją na sygnały środowiskowe. Niektóre warianty genetyczne mogą wpływać na żywotność nasion lub ich reakcje fizjologiczne, jednak zdolność kiełkowania nie jest cechą, którą można wiarygodnie przewidzieć wyłącznie na podstawie nazwy odmiany.
W trakcie dojrzewania nasiona zachodzą zmiany umożliwiające ograniczenie aktywności metabolicznej i przetrwanie okresu spoczynku. Prawidłowy przebieg tych procesów ma znaczenie dla późniejszego rozwoju zarodka. Jeżeli rozwój nasiona zostanie zaburzony, jego zdolność do kiełkowania może być ograniczona niezależnie od pochodzenia genetycznego.
Znaczenie ma również starzenie się materiału nasiennego. Wraz z upływem czasu mogą zachodzić procesy prowadzące do uszkodzeń komórkowych i pogorszenia funkcjonowania struktur odpowiedzialnych za wzrost. Tempo tych zmian zależy od właściwości nasiona i warunków przechowywania.
Trzeba zatem odróżnić genetyczną zdolność do prawidłowego rozwoju od aktualnej żywotności konkretnego nasiona. Nawet materiał pochodzący z populacji o korzystnych właściwościach może wykazywać obniżoną zdolność kiełkowania, jeżeli jego rozwój został zaburzony lub doszło do pogorszenia stanu fizjologicznego.
Ocena jakości materiału nasiennego wymaga odpowiednich metod badawczych. Sam wygląd zewnętrzny może dostarczać ograniczonych informacji, ale nie pozwala w pełni określić żywotności zarodka ani jego charakterystyki genetycznej.
Jak naukowcy badają dziedziczenie cech u konopi?
Badania genetyczne konopi wykorzystują różne metody, których wybór zależy od analizowanego problemu. W niektórych przypadkach wystarczają obserwacje fenotypowe i porównania pomiędzy populacjami. W innych konieczne jest zastosowanie metod molekularnych umożliwiających analizę określonych fragmentów DNA.
Jednym z podstawowych podejść jest analiza segregacji cech w kolejnych pokoleniach. Badacze obserwują, jak określone właściwości pojawiają się u potomstwa i czy ich rozkład odpowiada przewidywaniom wynikającym z danego modelu genetycznego. Pozwala to oceniać, czy dana cecha może być kontrolowana przez pojedynczy gen, wiele genów lub bardziej złożony układ dziedziczenia.
Drugim podejściem są badania markerów molekularnych. Markery to określone warianty DNA, które można wykrywać i porównywać pomiędzy osobnikami. Mogą pomagać w identyfikowaniu podobieństwa genetycznego, analizowaniu pokrewieństwa i badaniu struktury populacji.
W bardziej zaawansowanych analizach wykorzystuje się sekwencjonowanie DNA, czyli określanie kolejności nukleotydów w badanym materiale genetycznym. W zależności od zastosowanej metody badanie może obejmować wybrane regiony genomu albo jego znacznie większą część.
Dane molekularne wymagają jednak ostrożnej interpretacji. Wykrycie określonego wariantu DNA nie zawsze oznacza, że można bezpośrednio przewidzieć jego wpływ na fenotyp. Często konieczne jest uwzględnienie innych genów, poziomu ekspresji, warunków środowiskowych i wyników badań funkcjonalnych.
W badaniach cech wielogenowych stosuje się również analizy statystyczne, które pozwalają oceniać związki pomiędzy zmiennością genetyczną a obserwowanymi właściwościami. Takie podejście może wskazywać regiony genomu związane z daną cechą, ale samo powiązanie statystyczne nie zawsze dowodzi bezpośredniego mechanizmu przyczynowego.
Najbardziej wiarygodny obraz dziedziczenia powstaje wtedy, gdy wyniki analiz genetycznych są zestawiane z obserwacjami biologicznymi i odpowiednio zaprojektowanymi badaniami. Żadna pojedyncza metoda nie odpowiada na wszystkie pytania dotyczące genotypu, fenotypu i stabilności cech.
Ograniczenia przewidywania cech na podstawie samego DNA
Rozwój nowoczesnych metod genetycznych zwiększył możliwości analizowania genomów roślin, jednak nie oznacza to, że wszystkie cechy można obecnie przewidzieć z całkowitą dokładnością. Informacja zapisana w DNA stanowi podstawę rozwoju organizmu, ale sposób jej wykorzystania zależy od wielu procesów biologicznych.
W przypadku cech prostych, związanych z dobrze poznanym wariantem genetycznym, przewidywanie może być stosunkowo dokładne. Sytuacja jest bardziej skomplikowana przy właściwościach wielogenowych, w których niewielkie efekty wielu loci łączą się z wpływem środowiska.
Znaczenie mają również oddziaływania pomiędzy genami. Dwa warianty, które osobno wykazują określone efekty, mogą prowadzić do innego rezultatu, gdy występują razem. Takie zależności sprawiają, że proste modele nie zawsze dobrze opisują rzeczywistą biologię roślin.
Dodatkowym ograniczeniem jest jakość danych referencyjnych. Jeżeli określone zależności genetyczne zostały zbadane w niewielkiej lub nietypowej populacji, uzyskane wyniki mogą nie przekładać się bezpośrednio na inne linie konopi. Przewidywanie oparte na danych z jednej populacji wymaga więc ostrożności przy stosowaniu go do materiału o odmiennym pochodzeniu.
Istotna jest również różnica pomiędzy wykrywaniem wariantu genetycznego a określaniem jego funkcji. Samo stwierdzenie, że określony fragment DNA występuje częściej u osobników wykazujących daną cechę, nie wystarcza do udowodnienia, że to właśnie ten fragment bezpośrednio odpowiada za jej rozwój.
W praktyce genotyp należy traktować jako źródło informacji o biologicznych predyspozycjach, a nie jako kompletny opis przyszłego fenotypu. Im bardziej złożona cecha, tym większe znaczenie ma uwzględnienie dodatkowych danych i ograniczeń przyjętego modelu.